


المحاضرة الثامنة ع الأصل المشترك
المحاضرة الثامنة عشر
الأصل المشترك
كنا نتحدث عن كيفية دمج فهمنا الكتابي للخليقة والعالم مع النموذج التطوري العلمي المعاصر. سوف تتذكر آخر مرة رأينا فيها أن هناك ثلاث سمات رئيسية للنموذج التطوري المعاصر. الأول هو السلالات مع التعديل - فالكائنات الحية تتسلسل من كائنات سابقة مع بعض التعديلات. ثانيًا، إعادة بناء الشجرة التطورية التي توضح كيف ترتبط جميع الكائنات الحية ببعضها البعض كفروع من فروع من الفروع حتى يعود المرء إلى سلف بدائي واحد. أخيرًا، لدينا الآليات التفسيرية للطفرة العشوائية والانتقاء الطبيعي كتفسير لتنمية التطور. ما نريد أن ننظر إليه الآن بمزيد من التفصيل هو فرضية الأصل المشترك - أن جميع الكائنات الحية تنحدر من سلف بدائي. لنترك جانبا الآن النقطة الثالثة - مسألة الآليات. هنا نريد ببساطة إلقاء نظرة على تلك النقطة الأولى - هل هي الحالة التي يدعم فيها الدليل فكرة أن جميع الكائنات الحية تشترك في أصل مشترك؟
الأصل المشترك
يبدو لي هنا، كما حاولت أن أنظر إليه بموضوعية بقدر ما أستطيع، أن الأدلة تبدو مختلطة. أقوى دليل لصالح فرضية الأصل المشترك مستمد من التشابه الجيني لجميع الكائنات الحية تقريبًا. تشترك جميع الكائنات الحية تقريبًا في نفس الرمز الجيني أو الحمض النووي. في الواقع، من المذهل مدى تشابه الكائنات الحية في حمضها النووي مع بعضها البعض. علاوة على ذلك، فإن التشابه الجيني بين الكائنات الحية يتوافق مع مواقفها على شجرة الحياة التطورية. تتشابه الكائنات الحية الموجودة على نفس فرع الشجرة مع بعضها البعض جينيًا أكثر من الكائنات الحية الموجودة على فرع مختلف من الشجرة. على سبيل المثال، الخفافيش والحوت أكثر تشابهًا وراثيًا من الخفافيش والسحلية أو الخفافيش والإسفنج.
يمكن لمؤيد الخلق الخاص أن يرد على هذا بالقول إن الله ببساطة استخدم نفس خطة التصميم مرارًا وتكرارًا في خلق أشكال الحياة البيولوجية. لا يعني التشابه الجيني للكائنات الحية المتنوعة أن إحداهما تطورت من الأخرى. لإعطاء تشبيه: تستخدم فورد وجنرال موتورز نفس النوع من خطة التصميم لتصنيع سياراتهم، ولكن هذا لا يعني أن شيفروليه تطورت من فورد. لديهم ببساطة خطة تصميم مماثلة. ربما يمكن للمرء أن يقول إن الله استخدم مرارًا وتكرارًا نفس خطة التصميم الأساسية؛ أي، نفس النوع من التركيب الجيني للكائنات المختلفة غير ذات الصلة التي خلقها. لم يكن هناك سبب للبدء من الصفر في كل مرة يخلق فيها كائنات حية جديدة.
أعتقد أن هذا احتمال. ولكن قد يبدو من المعقول أكثر أن نقول إن التشابه الجيني لجميع الكائنات الحية يرجع إلى ارتباطها ببعضها البعض. على سبيل المثال، في مقال حديث لعالم الوراثة السكانية دينيس فينيما من جامعة ترينيتي ويسترن[1]، حدد ثلاث ظواهر وراثية يصعب على مؤيد الخلق الخاص تفسيرها. اسمحوا لي أن أشاطركم هذه الظواهر الثلاث التي حددها بدقة.
أولاً، كما يقول، إن التشابه الجيني العميق بين الكائنات الحية يتجاوز بكثير ما هو مطلوب لكي ينتج الحمض النووي أحماض أمينية وبروتينات مماثلة من شأنها أن تحكم أنواع الكائنات الحية التي يتم إنتاجها.[2] يسمح الكود الجيني لـ ٦٤ مجموعة مختلفة من عناصره. يمكنك دمج العناصر المختلفة للشفرة الجينية في ٦٤ مجموعة مختلفة. لكن هذه التركيبات المختلفة تنتج فقط ٢٠ حمضًا أمينيًا. لذلك يوجد نوع من التكرار هنا - يمكن إنتاج نفس الحمض الأميني بعدة توليفات مختلفة من الشفرة الجينية. لديك٦٤ تركيبة مختلفة، ولكن ينتج عن ذلك فقط ٢٠ من الأحماض الأمينية. لذلك يمكن إنتاج نفس الحمض الأميني من خلال مجموعات مختلفة من عناصر الكود. لذلك لكي يتشارك كائنان في أجزاء متشابهة من الأحماض الأمينية، ولكي يكونا متشابهين من الناحية الجينية، لا يجب أن يكون لديهما هذا التشابه البنيوي العميق على مستوى الشفرة الجينية. ومع ذلك، نجد مرارًا وتكرارًا أن الكائنات الحية التي يُعتقد أنها مرتبطة ببعضها لا تشترك فقط في تسلسل الأحماض الأمينية المتشابهة، ولكن التشابه الأعمق في مجموعات الشفرة الجينية. سيكون هذا التشابه الأعمق غير الضروري قابلاً للتفسير إذا كانت الكائنات الحية تشترك في أصل مشترك وبالتالي في رمز جيني مشترك. ولكن يبدو أنه سيكون بلا حافز إذا كان كل واحد منهم عبارة عن خلق خاص.
الظاهرة الثانية التي يشير إليها فينيما هي أن تنظيم جينات الكائنات الحية ذات الصلة[3] يقترح أصلًا مشتركًا. يعتقد أن تنظيم جيناتهم يدعم الأصل المشترك. نوعان يعتقد أنهما قد تباعدا مؤخرًا عن سلف مشترك لا يمتلكان الكثير من نفس الجينات فحسب، بل لهما أيضًا نفس الترتيب، أو التسلسل، لتلك الجينات. هذا التشابه في الترتيب ليس ضروريًا لكي يكون للكائنات خطط ووظائف جسدية متشابهة. يمكن أن يكون لديهم نفس الجينات وبالتالي خطط ووظائف الجسم المتشابهة، ولكن لا يحتاجون إلى نفس الترتيب. ومع ذلك، فإنهم يفعلون ذلك! يبدو أن الخلق الخاص يترك هذا التشابه بدون دافع بينما الأصل المشترك سيجعله مفهومًا. يتشاركون في ترتيب جيناتهم لأنهم يتسلسلون من بعضهم البعض.
أخيرًا، الظاهرة الثالثة هي وجود ما يسمى بالجينات الزائفة المشتركة في الكائنات الحية ذات الصلة التي تشير إلى أصل مشترك. الجين الزائف هو تسلسل الجين البائد الذي تم تعطيله من خلال الطفرة. كان يومًا ما تسلسلًا جينيًا عاملاً ولكن حدثت طفرة أدت إلى تعطيله، لذا فقد انتهى الآن. تم العثور على الكائنات الحية التي يعتقد أنها مرتبطة ارتباطًا وثيقًا بنفس الجينات الزائفة غير العاملة حتى في نفس الترتيب على الرغم من أن هذه الجينات البائدة لا تفعل شيئًا في أي من الكائنات الحية. قد يكون هذا التشابه منطقيًا بالنظر إلى الأصل المشترك، لكن من الصعب تفسير سبب قيام الله بإعادة إنتاج الأجزاء المكسورة لكائن آخر في كائن حي. لاستعارة تشبيه السيارات مرة أخرى، من الصعب معرفة سبب قيام المصمم بإعادة إنتاج مقبض لا يعمل في طراز آخر في طراز واحد من السيارات.
هذه الحجج بعيدة كل البعد عن أن تكون مقنعة وهي تقصر كثيرًا في إثبات أي شيء كاسح مثل فرضية الأصل المشترك - أن جميع الكائنات الحية تسلسل من سلف بدائي واحد. ومع ذلك، أعتقد أنهم يجعلون الخلق الخاص يبدو وكأنه مخصص، أو مفتعل، في ضوء الأدلة. لذا فإن الدليل الجيني، على ما أعتقد، هو أحد أفضل الأدلة التي تدعم فرضية الأصل المشترك.[4]
المناقشة
سؤال: في كتاب دنتون، التطور: نظرية في أزمة Evolution: A Theory in [5]Crisis (إنه يعمل في هذا المجال بالإضافة إلى كونه طبيب وعالم ميكروبيولوجي من خلال التدريب)، يشير إلى أنه كلما تقدمت وتنخفض درجة التعقيد داخل الأسرة، يظل التباعد الجيني كما هو حتى بالنسبة للكائنات الحية التي تختلف اختلافًا كبيرًا في التشكل وفترة الحمل ومعدل الطفرة، لذا فإن هذا يتحدث ضد هذا كونه عرضيًا وليس خلقًا خاصًا لأن التسلسل لا يتغير.
الإجابة: أليست هذه هي النقطة الثانية التي ذكرها فينيما والتي استشهدت بها؟ يبدو أن ترتيب هذه الجينات يشير إلى أصل مشترك.
المتابعة: ربما من ناحية، ولكن من ناحية أخرى، تتوقع أنه نظرًا لأن فترات الحمل كانت مختلفة وكان الشكل مختلفًا ومعدلات الطفرات مختلفة تمامًا لدرجة أنك سترى بعض الحركة أو الانقباض أو أي شيء آخر، من الكائن الأصلي. لذا فإن هذا هو الجانب الآخر في المعارضة لهذا. إنه سيف ذو حدين، فلماذا لا يتغير هذا إذا كانت هذه الكائنات الحية مختلفة تمامًا في تلك المناطق.
الإجابة: حسنًا، هذا موجود في كتاب مايكل دينتون التطور: نظرية في أزمة Evolution: A Theory in Crisis، أليس كذلك؟
المتابعة: نعم. أنا أحوال ان استرجع من ذاكرتي لأنه مضى وقت طويل منذ أن قرأته.
الإجابة: نعم، نفس الشيء هنا.
سؤال: أجد أن استخدام الجينات لا يختلف عن مناقشة أوجه التشابه في علم التشكل. لقد ذهبنا إلى الجينات وقلنا "لو كنت المصمم، ما كنت لأفعل ذلك، لذلك لم يكن الله ليفعل ذلك." أعتقد أن التفسيرات هنا هي، "حسنًا، انظروا، لديها بعض الأشياء البائدة التي لا نعرف حقًا ما الذي تفعله وهي موجودة في كلا الأمرين، لذلك إذا كان الله مصممًا مثاليًا لما فعل ذلك لأنني لو كنت أصممه لما كنت قد فعلت ذلك ". هذا هراء.
الإجابة: أعتقد أنك تقدم نقطة جيدة. يبدو أن النقد هنا يستند إلى وجهة النظر القائلة بعدم وجود أي دافع للمصمم أو المبدع للقيام بذلك. ثم هذا يعني أنك تفكر في الدوافع وما الذي قد يحفز المصمم على القيام بذلك. عندما تدخل في ذلك، يبدو أن هذا تخميني للغاية، أليس كذلك؟ التكهن حول الدوافع المحتملة التي يمكن أن يمتلكها المصمم، على سبيل المثال، لامتلاك نفس مجموعات الشفرة الجينية لإنتاج هذه الأحماض الأمينية المختلفة. أعتقد أنك تقدم نقطة جيدة.
سؤال: هناك شيء واحد يزعجني حقًا - في كتاب فرانسيس كولينز، يجادل بأن الفئران والبشر قد تطوروا من نفس الأصل لأن هناك هذا الجين الزائف في الفئران والبشر يبدو أنه سيعمل، ولكن في منتصف الطريق وفي مرحلة ما تم قطعه للتو وهو موجود في منطقة الحمض النووي غير المرغوب فيه، وبالتالي فهو دليل على أصل مشترك.[6] حسنًا، أفترض أنه إذا كنت تتفق معه في أنه حرفياً هو نصف جين تم قطعه (والذي يبدو أنه مجرد تكهنات) وهو حرفياً في منطقة النفايات التي لن تتحول في النهاية إلى حمض نووي فعال، ربما هذا هو دليل لكني أنكر أنها منطقة خردة حرفياً.
الإجابة: نعم، ويوضح فيناما هذه النقطة - لا تساوي الجينات الزائفة مع الحمض النووي غير المرغوب فيه. على ما يبدو، هذه ليست الأشياء نفسها تمامًا. قد يكون الأمل الممنوح للخلقي الخاص هو أنه قد تكون هناك بعض الوظائف الموجودة لهذه الجينات الزائفة في هذه الكائنات العليا.
المتابعة: أنا فقط أقول إنه عندما يتم ذكر الدليل بهذه الطريقة، هناك الكثير من تحميل الاستنتاج بالفعل في عرض الدليل. يبدو أن هناك قدرًا كبيرًا من الاستدارة هنا.[7]
دعني أنتقل إلى النقطة التالية. لقد اقترحت أن الدليل الجيني ربما يكون أفضل دليل لصالح فرضية الأصل المشترك. من ناحية أخرى، فإن الأدلة الأحفورية تقف في مواجهة عقيدة الأصل المشترك.
عندما اقترح داروين نظريته، كانت إحدى نقاط ضعفها الرئيسية أنه لا توجد كائنات حية اليوم تقف في منتصف الطريق بين الكائنات الحية الأخرى كأشكال انتقالية بينها. لا نرى أشكالًا انتقالية بين الحيوانات التي تعيش اليوم. إنها تشبه الأوراق الموجودة على المظلة الخارجية للشجرة ولا نرى الأغصان التي تؤدي إلى هذه الأوراق - فقط نرى الأوراق على المظلة. أجاب داروين على هذا الاعتراض بالقول إن كل هذه الحيوانات الانتقالية كانت موجودة في الماضي وسيتم اكتشافها في النهاية. ومع ذلك، فقد اكتشف علماء الأحافير قدرًا كبيرًا من بقايا أحافير لحيوانات منقرضة منذ أن نشر داروين لأول مرة عن أصل الأنواع On the Origin of Species، وبشكل كبير لم يعثروا على هذه الأشكال الانتقالية المتوقعة. بدلاً من ذلك، ما وجدوه هو مجرد حيوانات ونباتات أكثر تميزًا ماتت - كما كانت، ببساطة المزيد من الأوراق على مظلة الشجرة، ولكنها انقرضت الآن. لم يتم العثور على الفروع والأغصان المشتركة التي تربطهم بشكل عام.
هناك بالفعل أشكال انتقالية معينة مثل الأركيوبتركس Archaeopteryxوهو طائر يظهر بعض سمات الزواحف مثل المخالب على جناحيه وأسنانه في منقاره. لكن من المهم أن نفهم أنه عندما يتحدث علماء الأحياء التطورية أو علماء الأحافير عن الأشكال الانتقالية، فإنهم يستخدمون هذه الكلمة بطريقة غريبة تمامًا كما رأينا الطريقة التي استخدمت بها كلمة "عشوائي" لا تعني الصدفة. لا يعني الشكل الانتقالي "شكل وسيط بين شكل سابق وشكل لاحق لوحظ اليوم". ليس هذا ما يعنيه الشكل الانتقالي. الشكل الانتقالي هو ببساطة كائن حي يعرض سمات أنواع مختلفة من الكائنات الحية. على سبيل المثال، يُطلق على الأركيوبتركس الشكل الانتقالي لأنه يُظهر سمات الطيور وخصائص الزواحف. وبهذا المعنى فهو انتقالي. لكنها في الحقيقة ليست انتقالية بمعنى أنها شكل وسيط. هنا لدينا عرض تقديمي يوضح تطور الطيور. [انظر الشكل ٢ أدناه.]
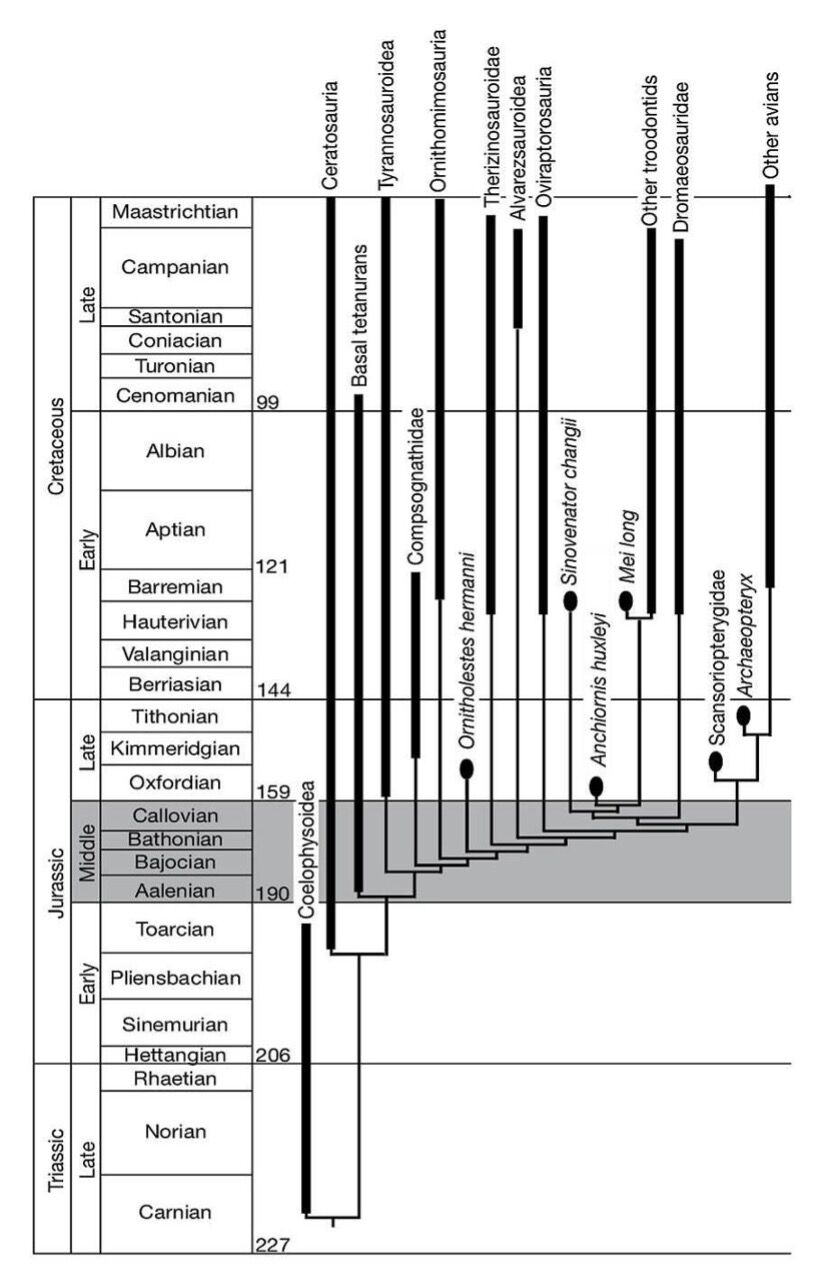
الشكل ٢ – تطور الطيور
ما ستراه هناك هو أن الأركيوبتركس في الواقع لا يتطور إلى طيور حديثة! انها فقط تنقرض. إنه ليس انتقالًا من الزواحف إلى الطيور الحديثة. تنشأ الطيور الحديثة على فرع منفصل تمامًا من الشجرة. علاوة على ذلك، فإن الديناصورات ذات الريش ترودونتيدس - troodontids - لا تتطور أيضًا إلى طيور حديثة. لم تكن هذه الديناصورات ذات الريش في طريقها، على ما يبدو، إلى أن تصبح طيورًا. كانت مجرد زواحف طورت ريشها وانقرضت في النهاية. لذلك لا يعتبر الأركيوبتركس ولا الديناصورات ذات الريش من الأشكال الوسيطة للطيور الحديثة. كما ترى، فأنت لا تعرف حقًا من أين أتت الطيور الحديثة على الرسم البياني. لذلك فهي انتقالية ببساطة بمعنى أنها تعرض سمات أنواع أخرى من الحياة. يتميز الأركيوبتركس بخصائص الزواحف والطيور. وبالمثل، فإن ترودونتيدس troodontids هي ديناصورات (زواحف) ولكن لديها ريش. وبالتالي فإن الادعاء هو أن لديهم سلفًا مشتركًا لم نعثر عليه بعد. لذلك، فهي انتقالية بمعنى ما، ولكنها ليست انتقالية بمعنى كونها وسيطة في الطريق إلى أشكال الحياة الحديثة هذه.
علاوة على ذلك، إذا كانت فرضية الأصل المشترك صحيحة، فإننا لا نتحدث عن وجود بعض الأشكال الانتقالية مثل الأركيوبتركس. بدلاً من ذلك، كما يقول مايكل دينتون في كتابه، يجب أن يكون هناك ملايين وملايين من هذه الأشكال الانتقالية في سجل الحفريات.[8] فكر، على سبيل المثال، في جميع الأشكال الوسيطة التي يجب أن تكون موجودة حتى يتسلسل الخفافيش والحوت من سلف مشترك. ومع ذلك، فهي ليست هناك. علاوة على ذلك، يرتبط الخفافيش والحوت ارتباطًا وثيقًا في الشجرة التطورية للحياة في أن الخفافيش والحيتان من الثدييات. كلاهما من الفقاريات. فكر في عدد الأشكال الانتقالية التي يجب أن توجد حتى ينحدر الخفاش والإسفنجة من نفس السلف. لذلك لا يمكن استبعاد هذه المشكلة بالقول إننا لم نتعمق بالقدر الكافي. لم يتم العثور على الأشكال الانتقالية لأنه لا يبدو أنها موجودة. سيكون هذا الغياب متسقًا مع إصدارات أطروحة السلالة المشتركة التي تروق للقفزات في التطور التطوري، لذلك لن تجد الأشكال الانتقالية، ولكنه سيخبرنا عن النسخ التدريجية في تطورها.
لذلك يبدو لي أن البيانات المتعلقة بالأصل المشترك مختلطة. أعتقد أن الدليل الجيني يدعم فرضية الأصل المشترك لكن الأدلة الأحفورية تميل إلى عكس ذلك. لذلك سيحاول حكمنا النهائي أن نسأل كيف يمكننا تجميع هذا الدليل معًا بطريقة تشرح الدليل على أفضل وجه.[9]
[1] Dennis R. Venema, “Genesis and the Genome: Genomics Evidence for Human-Ape Common Ancestry and Ancestral Hominid Population Sizes”, Perspectives on Science and Christian Faith, Volume 62 Number 3, September 2010, pp. 166-78. An online copy of this article can be found at: http://www.asa3.org/ASA/PSCF/2010/PSCF9-10Venema.pdf (accessed August 20, 2013).
[2]٥:٢٣
[3] Venema uses the term “synteny” to label this phenomenon. He says, “Synteny is a technical term for conservation of gene order along chromosomes between relatives.” (Ibid. p. 167.)
[4] ١٠:٠٣
[5] Michael Denton, Evolution: A Theory in Crisis (Chevy Chase, MD: Adler & Adler, Publishers, Inc., 1986).
[6] Francis S. Collins, The Language of God: A Scientist Presents Evidence for Belief (New York: Free Press, 2006) pp. 135-37.
[7] ١٥:٠٢
[8] ٢٠:٠٣
[9] إجمالي وقت التشغيل: ٢٢:٠٥ (حقوق الطبع والنشر © ٢٠١٣ ويليام لين كريج)